
Claude Grison
Des symbioses du vivant à l’économie symbiotique : la coopération comme source de solutions durables
Version originale en français
Il n’a échappé à personne que nous traversons une période de crises multiples : géopolitique, sociale, énergétique, agricole, industrielle, écologique et climatique. Edgar Morin parlait de « polycrises » pour désigner cette imbrication de bouleversements qui, loin de se succéder indépendamment, se renforcent mutuellement. La compétition internationale pour le contrôle des métaux critiques, les tensions sur les ressources énergétiques, les records de chaleur, les inondations, les fragilités sanitaires et sociales ou encore les interrogations suscitées par l’essor de l’intelligence artificielle semblent, à première vue, relever de domaines distincts. Pourtant, tous ces phénomènes entretiennent des relations étroites et contribuent, directement ou indirectement, à fragiliser les écosystèmes dont dépend notre avenir.
Dans ce contexte, le recul relatif des préoccupations écologiques face au retour des rivalités géopolitiques pourrait nous faire oublier une réalité essentielle : les équilibres du vivant conditionnent aussi notre sécurité alimentaire, notre santé, notre accès aux ressources et notre capacité à développer une industrie résiliente.
Notre modèle économique dominant, fondé sur une logique linéaire d’extraction, de production, de consommation, de dégradation des écosystèmes à chaque étape, d’épuisement de ses propres ressources, révèle aujourd’hui ses limites.
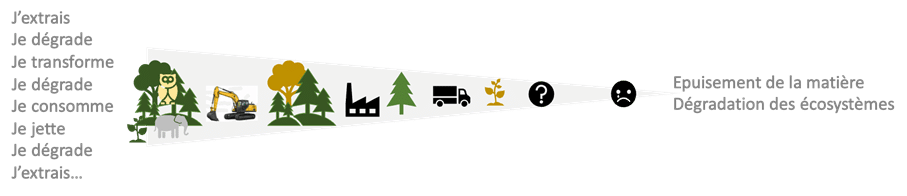
Figure 1. Modèle économique linéaire
Les PFAS, les microplastiques, les éléments métalliques, les pesticides et les résidus pharmaceutiques en sont des illustrations particulièrement préoccupantes. Nous produisons massivement, prélevons des ressources souvent non renouvelables, dispersions des composés indésirables dans l’environnement, puis tentons de réparer les dommages, parfois à des coûts considérables et sans parvenir à retrouver les écosystèmes initiaux. Les « polluants éternels », le cadmium présent dans certains engrais phosphatés ou les insecticides organochlorés témoignent de cette contradiction : une activité peut sembler économiquement rentable à court terme tout en engendrant une dette écologique dont plusieurs générations devront assumer les conséquences.
À cette dette s’ajoute une dépendance stratégique. En s’appuyant sur des chaînes d’approvisionnement mondialisées et sur l’extraction primaire, notre économie devient vulnérable aux tensions internationales, aux ruptures logistiques et à la concentration des ressources dans un nombre limité de pays. Le paradoxe est manifeste : la transition énergétique, indispensable à la lutte contre le changement climatique, accroît elle-même la demande en métaux primaires et stratégiques pour les batteries, les réseaux électriques, les panneaux photovoltaïques, l’électronique, la chimie et les centres de données.
L’économie circulaire ne peut donc plus être considérée comme une simple posture environnementale. Elle devient une stratégie de souveraineté, une stratégie de résilience industrielle, une réponse à la volatilité des ressources, une réduction du risque géopolitique, une limitation des coûts futurs de dépollution et de problèmes de santé. Sortir d’un modèle économique linéaire est donc aussi une nécessité industrielle, énergétique, stratégique et bien sûr ne l’oublions pas écologique, car tous ces problèmes sont interconnectés.
Face à ce constat, il ne s’agit pas seulement de réduire les dommages provoqués par nos activités. Il nous faut aussi imaginer d’autres manières de produire, de coopérer et de créer de la valeur. C’est précisément là que le vivant peut nous inspirer. Il est source d’innovation constante et de ressources qu’il renouvelle, qu’il régénère ; il évolue, s’adapte, interagit, optimise et coopère. L’évolution a produit des systèmes coopératifs extrêmement efficaces et structurants pour la biosphère. Il est intéressant de redécouvrir la coopération à toutes les échelles de la Vie, et voir de comment la coopération biologique, les symbioses, l’entre-aide et la résilience peuvent inspirer des modèles économiques de type symbiotique, régénératif et finalement durable.
Une illustration particulièrement spectaculaire nous est offerte par l’association entre certaines plantes et les bactéries capables de fixer l’azote atmosphérique. Le diazote représente près de 78 % de l’air, mais sa remarquable stabilité chimique le rend inaccessible à la plupart des organismes. Lavoisier lui-même l’avait qualifié de « gaz sans vie ». Pour transformer cette ressource abondante en azote assimilable, notre agriculture dépend largement des engrais industriels.
La production d’ammoniac repose principalement sur le procédé Haber-Bosch, qui associe le diazote de l’air à du dihydrogène dans des conditions de température et de pression élevées, généralement autour de 450 °C et de 150 atmosphères. L’hydrogène étant encore majoritairement produit à partir du gaz naturel, avec émission de dioxyde de carbone, le coût de l’ammoniac reste étroitement lié aux marchés énergétiques. Le gaz naturel peut représenter 60 à 80 % de son coût de production. Toute perturbation de l’approvisionnement se répercute ainsi sur le prix des engrais et, par conséquent, sur celui de la production agricole. La dépendance aux ressources fossiles devient alors une vulnérabilité alimentaire autant qu’économique et géopolitique.

Figure 2. Production chimique des engrais azotés
Or, certaines bactéries réalisent une transformation comparable à température et pression ambiantes, grâce à une enzyme remarquable : la nitrogénase. Cette performance repose sur des mécanismes moléculaires sophistiqués, qui mobilise de l’énergie et des électrons pour réduire le diazote en ammoniac. Chez les rhizobia, bactéries associées aux légumineuses, cette capacité ne s’exprime pleinement que dans le cadre d’une symbiose étroitement organisée avec la plante hôte.
L’association entre Anthyllis vulneraria, une légumineuse, et Rhizobium metallidurans en constitue un exemple saisissant. Elle s’est développée dans un ancien bassin minier cévénol où les concentrations en zinc, cadmium et plomb atteignent des niveaux qui sont 500 à 800 fois supérieurs aux normes européennes. Dans un tel environnement, plante et bactérie doivent affronter la toxicité des métaux, mais aussi trouver les ressources énergétiques nécessaires à leur fonctionnement dans un sol contraignant, stressant et pauvre en nutriments. Pourtant, leur association leur permet de prospérer là où de nombreux organismes ne pourraient survivre.
La plante fournit à la bactérie des composés carbonés issus de la photosynthèse. En retour, la bactérie transforme l’azote atmosphérique en une forme utilisable par son hôte. Mais cette coopération ne se résume pas à un simple échange de nutriments : elle repose sur un dialogue moléculaire précis, une adaptation physiologique réciproque et une coordination étroite des métabolismes.

Figure 3. Anthyllis vulneraria et Rhizobium metallidurans : une symbiose exceptionnelle en milieu extrême
Tout commence par des signaux chimiques. Les racines de la légumineuse libèrent des flavonoïdes qui attirent les bactéries compatibles. Celles-ci produisent à leur tour des molécules spécifiques, reconnues par la plante, qui déclenchent une cascade d’événements cellulaires. La racine se transforme progressivement et forme des nodosités, nouveaux organes au sein desquels les bactéries se différencient en bactéroïdes spécialisés dans la fixation de l’azote.

Figure 4. Une symbiose résulte d’une adaptation physiologique de chaque partenaire et d’un dialogue élaboré
La plante participe activement à cette organisation. Elle produit notamment la léghémoglobine, une protéine qui régule finement la disponibilité de l’oxygène dans les nodosités. Il faut en effet satisfaire les besoins respiratoires des bactéries tout en protégeant la nitrogénase, particulièrement sensible à l’oxygène. La plante apporte également des nutriments adaptés aux besoins de son partenaire et contribue à orienter son fonctionnement métabolique.
Cette coopération implique un investissement considérable. La fixation du diazote exige une dépense énergétique élevée, supérieure à seize molécules d’ATP par molécule de diazote réduite.
Comment R. metallidurans parvient-elle à supporter une telle contrainte dans un milieu pollué, où les ressources sont rares et le stress métallique important ?
Nos travaux ont mis en évidence une stratégie métabolique particulièrement adaptée à ces conditions. Plutôt que de dégrader le glucose uniquement par les voies les plus courantes, la bactérie mobilise la voie d’Entner-Doudoroff non phosphorylante. Cette voie permet notamment de produire rapidement du gluconate, puis du 2-céto-3-désoxygluconate, ou KDG, un composé que de nombreux autres microorganismes utilisent peu ou pas. Elle limite certaines dépenses énergétiques liées à la phosphorylation et réduit la dépendance à des intermédiaires phosphorylés, particulièrement contraignants lorsque le phosphore est rare. Elle contribue également à produire du NADPH, indispensable aux systèmes antioxydants qui protègent la cellule contre le stress induit par les éléments métalliques.
Ainsi, dans un environnement extrême, la bactérie ne se contente pas de tolérer des conditions défavorables : elle adapte profondément son métabolisme pour y survivre. La plante, de son côté, fournit un environnement favorable et sélectionne les partenaires les plus performants. Cette association illustre une propriété fondamentale du vivant : la coopération n’est pas une faiblesse, mais une stratégie d’adaptation et de résilience.
Des mécanismes comparables sont observés dans les milieux miniers de Nouvelle-Calédonie. Des espèces fixatrices d’azote, telles que Gymnostoma intermedium, Serianthes calycina et Storckiella pancheri, peuvent se développer sur des sols dégradés, riches en métaux phytotoxiques comme le nickel, le manganèse, le chrome ou le cobalt. En enrichissant progressivement ces sols en azote, elles contribuent à créer des conditions favorables à l’installation d’autres espèces végétales, plus sensibles aux contraintes du milieu.

Figure 5. Utilité des espèces fixatrices d’azote dans la restauration des sites dégradés et pollués
La compréhension de ces interactions ouvre ainsi des perspectives concrètes pour la restauration écologique. Dans le cas d’Anthyllis vulneraria, l’inoculation des semences avec Rhizobium metallidurans cultivé en présence de KDG, améliore la croissance de la légumineuse. Associée à Noccaea caerulescens, une espèce particulièrement performante pour l’accumulation du zinc, cette approche a contribué à amorcer la recolonisation végétale d’un bassin minier auparavant presque stérile. En quelques années, les conditions nécessaires à la reprise d’une succession écologique ont pu être rétablies.
Ce résultat montre que restaurer un écosystème ne consiste pas seulement à réintroduire des plantes ou à recouvrir un sol dégradé. Il s’agit aussi de réactiver des fonctions biologiques, de rétablir des interactions et de recréer les conditions dans lesquelles la biodiversité peut se reconstruire. Les organismes, leurs capacités physiologiques et leurs associations deviennent alors de véritables leviers d’action.
Cette histoire ne s’arrête pas à la restauration des sols. Elle révèle une autre possibilité, moins attendue : transformer certaines biomasses végétales en ressources pour la chimie durable.
Anthyllis vulneraria possède en effet une capacité remarquable à accumuler le zinc dans ses parties aériennes, à des concentrations pouvant dépasser 15 % de la masse sèche. Cette propriété, qui participe à son adaptation à certains environnements métallifères, ouvre une voie originale de valorisation. Les biomasses produites dans le cadre de la restauration écologique peuvent être transformées en matériaux catalytiques, dans lesquels le zinc et les autres éléments minéraux jouent un rôle actif dans les réactions chimiques.
C’est dans cette perspective qu’a émergé le concept d’écocatalyse : utiliser les propriétés minérales de biomasses végétales pour concevoir des catalyseurs, tout en réduisant le recours aux ressources primaires et aux procédés d’extraction et de traitements métallurgiques conventionnels. Une plante mobilisée pour restaurer un milieu dégradé peut ainsi devenir, à l’issue de son cycle de croissance, une ressource pour développer de nouvelles transformations chimiques.
Les applications obtenues sont nombreuses. Des écocatalyseurs issus de plantes hyperaccumulatrices ont permis de préparer des molécules présentant des activités anticancéreuses, des composés d’intérêt pour le traitement de certaines épilepsies pharmacorésistantes, ainsi que les précurseurs des ARNm. Ils ont également été utilisés pour produire des molécules inspirantes pour le biocontrôle, des réducteurs biomimétiques analogues au NADPH naturel et des matériaux conducteurs ou photoluminescents.

Figure 6. Utilité d’Anthyllis vulneraria en écocatalyse
Cette approche s’étend bien au-delà des plantes utilisées pour restaurer les sols. Certaines espèces aquatiques possèdent une capacité remarquable à séquestrer des éléments métalliques et des contaminants organiques. D’autres plantes, notamment parmi les espèces exotiques envahissantes, concentrent des éléments minéraux grâce à leurs systèmes racinaires particulièrement efficaces. Longtemps considérées uniquement comme des nuisances, ces espèces peuvent donc aussi être envisagées comme des ressources, à condition que leur prélèvement soit maîtrisé et qu’il contribue effectivement à la gestion des milieux concernés.
Dans ce cas, la biomasse issue de la dépollution ou du contrôle d’une espèce envahissante peut connaître une seconde vie. Après avoir contribué à extraire ou à concentrer certains éléments, elle devient une matière première pour la conception de matériaux catalytiques. Une opération de gestion écologique peut ainsi être associée à une valorisation chimique, plutôt qu’à la production d’un déchet supplémentaire.
L’originalité de l’écocatalyse réside également dans la complexité des matériaux qu’elle mobilise. La catalyse conventionnelle recherche souvent des métaux très purs, obtenus au terme de chaînes d’extraction, de séparation et de raffinage qui peuvent générer d’importants impacts environnementaux. À l’inverse, les écocatalyseurs conservent une partie de la diversité minérale accumulée et organisée par les plantes : zinc, calcium, potassium, magnésium, manganèse et autres éléments peuvent y coexister. Leur concentration et leur transformation conduisent à des architectures minérales originales, dont les propriétés dépendent à la fois des lois thermodynamiques et de la physiologie des organismes qui les ont produites.
L’exemple de Grevillea meisneri, plante hyperaccumulatrice de manganèse, est particulièrement éclairant. En mobilisant des mécanismes de transport et de stockage apparentés à ceux utilisés pour le calcium, elle organise l’accumulation du manganèse dans ses tissus en le co-localisant avec le calcium. Cette organisation contribue aux propriétés du matériau catalytique obtenu à partir de sa biomasse. La bio-inspiration devient ainsi un outil concret de conception chimique : comprendre comment le vivant organise la matière permet d’imaginer des matériaux et des réactions autrement difficiles à concevoir.

Figure 7. Grevillea mesneiri et la co-assimilation du Ca et du Mn
La coexistence de plusieurs espèces minérales peut également favoriser des phénomènes de catalyse coopérative. Plusieurs fonctions chimiques peuvent être réunies au sein d’un même matériau, permettant d’enchaîner des transformations fonctionnelles ou de limiter le nombre d’étapes nécessaires. Lorsque les procédés sont correctement conçus, cette approche peut réduire la consommation de réactifs, de solvants et d’énergie, ainsi que la production de déchets. Ces bénéfices doivent toutefois être évalués au moyen d’indicateurs de chimie verte et d’analyses de cycle de vie couvrant l’ensemble de la filière, de la production de la biomasse jusqu’au produit final. La naturalité d’un matériau ne suffit pas, à elle seule, à garantir sa durabilité ; c’est sa performance environnementale globale doit être démontrée de façon rigoureuse.
L’écocatalyse ouvre aujourd’hui des perspectives dans de nombreux domaines : réactions acido-basiques, oxydations, réductions, couplages croisés et conception de réactifs biomimétiques. Elle permet aussi d’explorer des solutions pour limiter la dépendance aux métaux stratégiques, notamment dans la chimie pharmaceutique. La disponibilité du palladium, indispensable à de nombreuses transformations utilisées dans la synthèse de médicaments, illustre bien l’enjeu. Développer des procédés plus sobres et valoriser des ressources alternatives peuvent contribuer à renforcer la résilience des chaînes de production, à sécuriser certains approvisionnements et à protéger les écosystèmes.
Ces travaux s’inscrivent dans une réflexion plus large sur la souveraineté sanitaire, la relocalisation de certaines productions et la transition vers une industrie moins dépendante de l’extraction primaire. Ils rappellent que la chimie durable ne se limite pas à remplacer un réactif par un autre ou à réduire l’impact d’une réaction isolée. Elle suppose de repenser l’origine des ressources, la conception des matériaux, les procédés de transformation et la destination des produits, en tenant compte de l’ensemble de leurs conséquences environnementales.
Le fil conducteur de ces recherches apparaît alors clairement. Une bactérie et une plante peuvent coopérer pour fixer l’azote dans un sol contaminé. Cette coopération peut contribuer à restaurer un écosystème dégradé. La plante utilisée dans cette restauration peut ensuite fournir une biomasse valorisable, dont les éléments minéraux permettront de concevoir des catalyseurs pour la chimie. Ce qui était considéré comme une contrainte — un sol pollué, une plante accumulatrice, une biomasse à gérer — peut ainsi devenir le point de départ d’une chaîne de solutions, à condition de préserver la cohérence écologique de chaque étape.
Il ne s’agit pas de prétendre que le vivant résout spontanément tous les problèmes que nous avons créés, ni que toute biomasse constitue nécessairement une ressource durable. Il s’agit plutôt d’apprendre à reconnaître les fonctions écologiques, les mécanismes de coopération et les propriétés de la matière que l’évolution a façonnés, puis de les mobiliser avec discernement. La science joue ici un rôle essentiel : comprendre avant d’imiter, mesurer avant de conclure, et démontrer que les bénéfices écologiques annoncés se traduisent effectivement dans les pratiques et sur tous la chaine de valeur.
Au fond, le vivant nous invite à changer de perspective. Dans une économie linéaire, les ressources sont prélevées, transformées puis jetées, tandis que les coûts environnementaux et écologiques sont souvent oubliés ou reportés sur les générations futures. Dans une économie régénérative, la restauration des milieux, la valorisation raisonnée des ressources et la création de nouvelles activités peuvent être pensées ensemble. La biodiversité n’y est plus seulement un patrimoine à protéger contre les activités humaines : elle devient aussi une source de connaissances et d’inspiration pour concevoir des solutions, sans jamais perdre de vue la nécessité de préserver une éthique responsable.
Au-delà des innovations technologiques, l’enseignement principal est peut-être ailleurs. Les mécanismes développés par le vivant dans les environnements les plus contraints montrent qu’il est possible de restaurer des écosystèmes dégradés tout en générant des ressources nouvelles. Lorsqu’elles sont valorisées par des procédés durables, ces ressources permettent d’imaginer une économie régénérative où la restauration écologique devient le point de départ de nouvelles activités industrielles. Les bénéfices environnementaux, économiques et sociaux cessent alors de s’opposer pour entrer dans une même dynamique de coopération et de résilience.

Figure 8. Un modèle d’économie symbiotique, régénérative et de coopération